メガテリウムは、およそ500万〜1万年前の南アメリカ大陸に生息していた地上性ナマケモノの巨大属で、和名では「大懶獣(だいらんじゅう)」または「オオナマケモノ」と呼ばれます。全長5〜6m・体重3〜4トンとアジアゾウに匹敵する巨体を持ちながらナマケモノ亜目に属する、地球史上最大級の異節類(貧歯類)です。長い鉤爪と頑丈な後肢で二足直立ができた地球史上最大の哺乳類でもあり、木の葉や果実をゆっくり食べる草食獣でした。約1万2000年前、南北アメリカ全域を襲った更新世末のメガファウナ絶滅の一員として、ヒトの到達と気候変動が重なる中で姿を消しています。現生ナマケモノのうちミツユビナマケモノ属(Bradypus)がもっとも近い親戚と分子系統解析で示されています。
分類と学名
分類階層
- 界:動物界 Animalia
- 門:脊索動物門 Chordata
- 綱:哺乳綱 Mammalia
- 上目:異節上目 Xenarthra
- 目:有毛目 Pilosa
- 亜目:ナマケモノ亜目 Folivora
- 科:メガテリウム科 Megatheriidae(絶滅)
- 属:メガテリウム属 Megatherium(Cuvier, 1796)
主な種
- M. americanum(模式種):最大種・パンパ・体重約3.7〜4トン・後期更新世
- M. tarijense:ボリビア・小型(Pseudomegatherium亜属)
- M. medinae / M. sundti:チリ・ボリビア・小型
- M. altiplanicum:ボリビア・鮮新世・約1トン
- M. celendinense:ペルー・アンデス・M. americanum級の大型
- M. urbinai:ペルー・後期更新世
- 他 M. gallardoi、M. parodii、M. istilarti など計10種前後
学名の由来「アメリカの巨獣」
ギリシア語 mega + therion
属名 Megatherium はギリシア語の μέγα(mega=大きい)と θηρίον(theríon=獣)を組み合わせた造語で、「巨大な獣」を意味します。模式種 Megatherium americanum を直訳すると「アメリカの巨獣」となります。命名者はフランスの解剖学者・古生物学者ジョルジュ・キュヴィエで、1796年に発表しました。化石哺乳類のなかで、属名と種小名の両方を持って初めて科学的に記載された記念碑的な種でもあります。
和名「大懶獣」──「懶(らん)」は「怠ける」
和名の「大懶獣(だいらんじゅう)」の「懶」は「怠ける」を意味する漢字で、ナマケモノ全般を指す古い呼称にもとづきます。より一般的な「オオナマケモノ」は「大きなナマケモノ」の直訳で、児童書や図鑑ではこちらが定着しています。現生の樹上性ナマケモノとは近縁の属ですが、体重で数百倍という圧倒的な巨体を持つ点で「オオ」を冠する意味は充分にあります。
大きさ・分布などの基本データ
| 大きさ | M. americanum:全長 約6m・体重 3.7〜4トン(アジアゾウ級)/小型種 M. sundti は約1.25トン |
|---|---|
| 生息年代 | 後期鮮新世〜完新世初期(約500万〜1万年前)/M. americanumは中期更新世後半(約40万年前)から |
| 分布 | 南米大陸のみ。M. americanumはパンパを中心にアルゼンチン北部からパタゴニア北端、南ボリビアまで。他のPseudomegatherium亜属はアンデス地域に分布 |
| 生息環境 | 温帯の乾燥〜半乾燥のステップ・草原・疎林。最終氷期のパンパは現在より乾燥した草原気候だった |
| 食性 | 木の葉・小枝・果実を主とする選択的な葉食性(一部で草も食べた同位体分析あり) |
| 絶滅 | 約1万2000年前(更新世末のメガファウナ絶滅の一環) |
3〜4トンの巨体──地球史上最大級の哺乳類
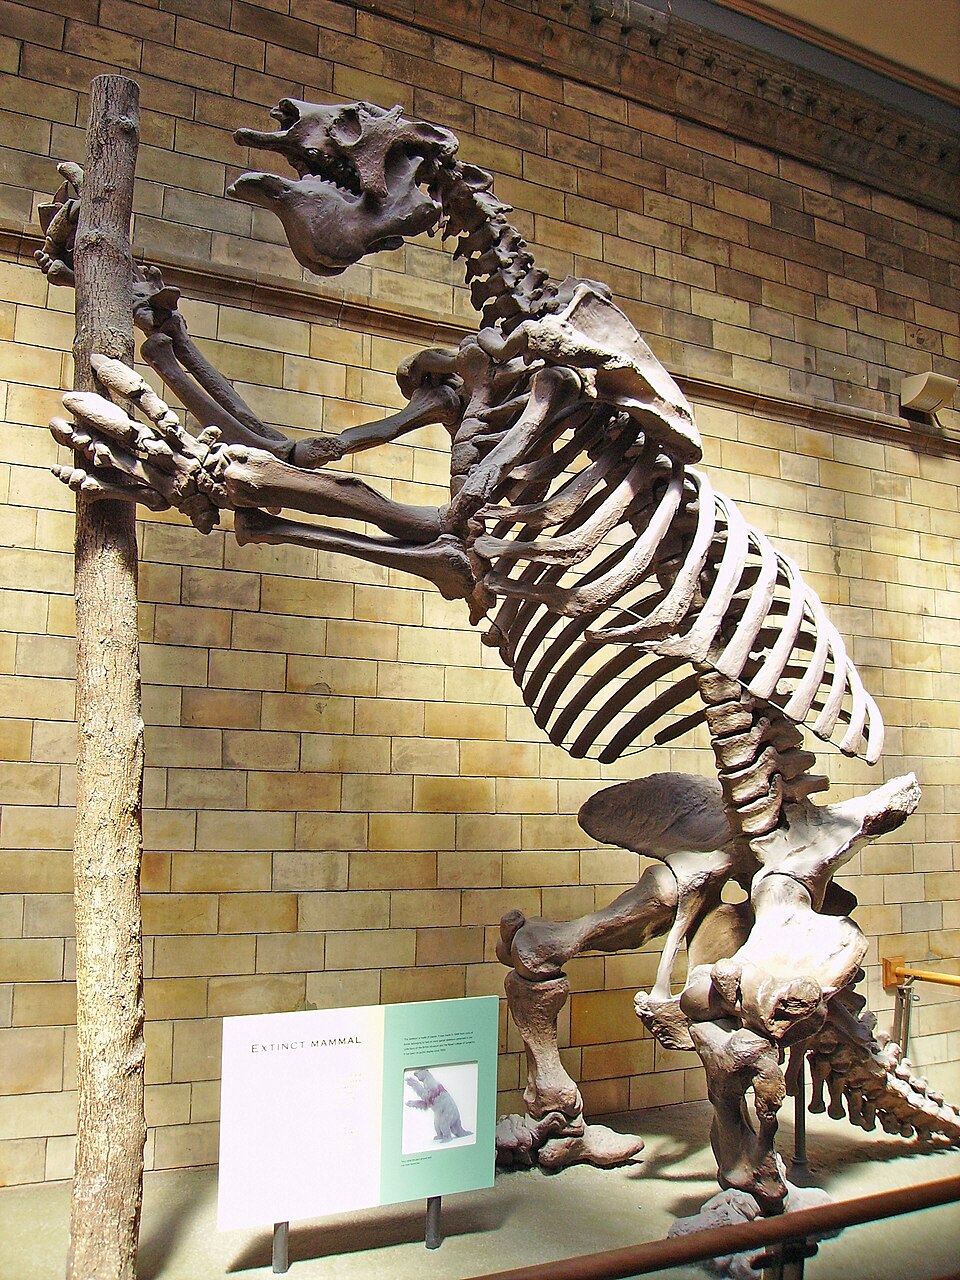
アジアゾウに匹敵する体格
全長6m・体重3.7〜4トン
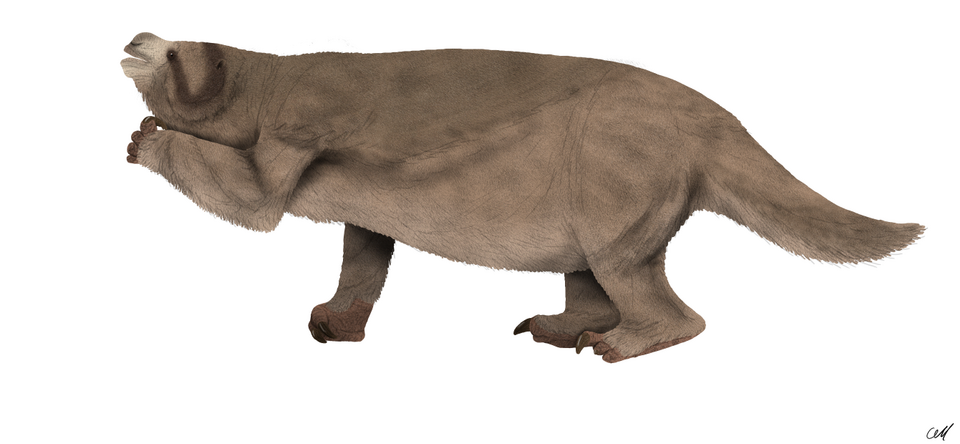
模式種 M. americanum は全長約6m、成体の体重は3700〜4000kgと推定されており、これは現生のアジアゾウとほぼ同じ規模です。体積解析による推定でも同程度の値が得られており、地上性ナマケモノとしては同科のエレモテリウムと並ぶ最大級、地球史上でも屈指の陸棲哺乳類でした。頭部は体に対して比較的小さく、クマに似た体躯と非常に頑丈な骨格を持ちます。
二足直立できた「最大の哺乳類」
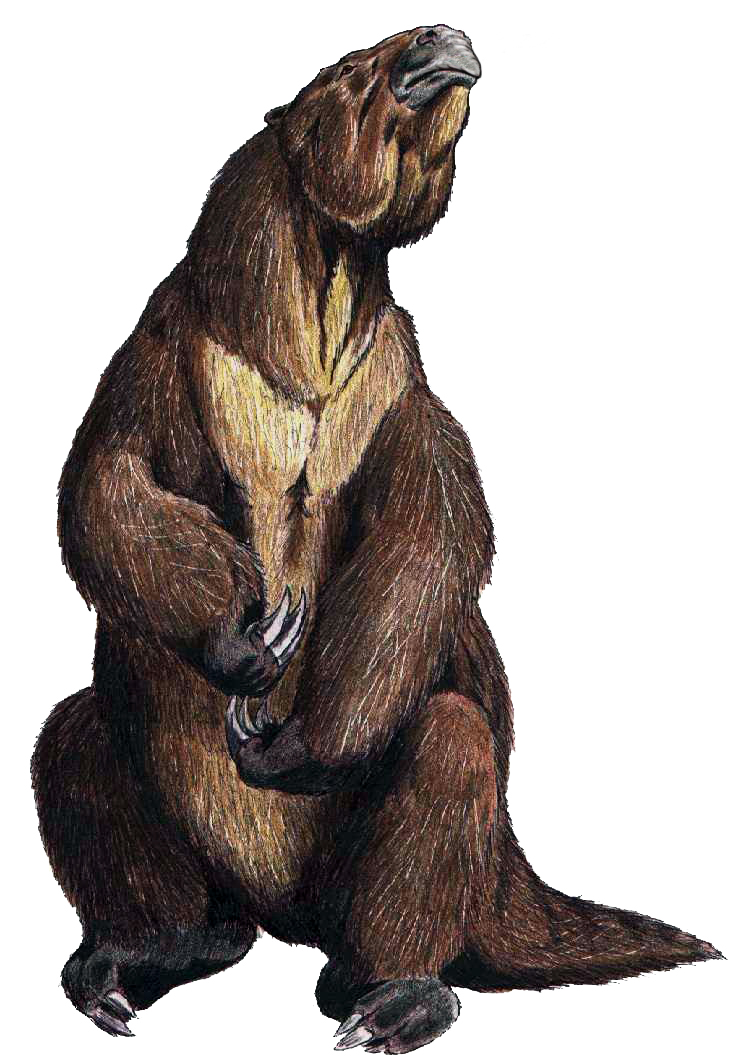
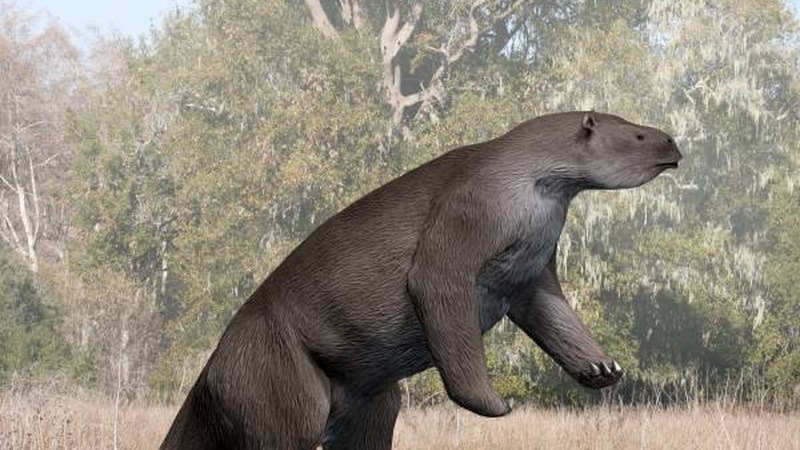
4トン近い体でありながら、後肢と太い尾で三点支持のように立ち上がる二足直立が可能だったとされています。木の高い枝から葉を引き寄せて食べるためで、地球史上二足直立できたもっとも大型の哺乳類の一つに数えられます。ただし移動時は四足歩行で、二足のまま歩き回ることはできなかったと推定されています。
頑丈な骨格と骨質小板
クマ型の体躯・鎖骨・厚い大腿骨
骨格はクマ型で、大腿骨は厚く長方形に近い形をしていました。他の異節類と同じく鎖骨(clavicle)を持ち、前肢を強く支える構造でした。尾は太く大きく、二足直立時の支えとなります。腰椎には異節類特有の余分な関節突起があり、この部分の椎骨どうしが互いに強くかみ合う独特の作りをしています。
皮膚に埋め込まれた骨質小板
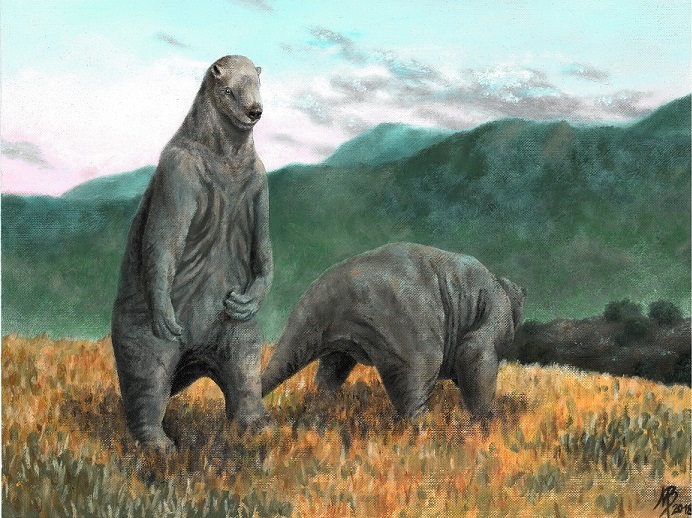
皮膚の中には小さな骨のかけら(骨質小板・オステオダーム)が埋め込まれていました。同じ異節上目のアルマジロほどの外殻ではありませんが、身を守る一定の役割を果たしたと考えられています。毛皮の有無は化石からは決定的な証拠が得られておらず、現生のゾウ・サイのようにほぼ無毛だったとする説と、寒冷な環境に適応するため3cm程度の厚い毛皮を持っていたとする熱力学的モデルの説が並立しています。
長い鉤爪と二足直立──食事と防衛の道具
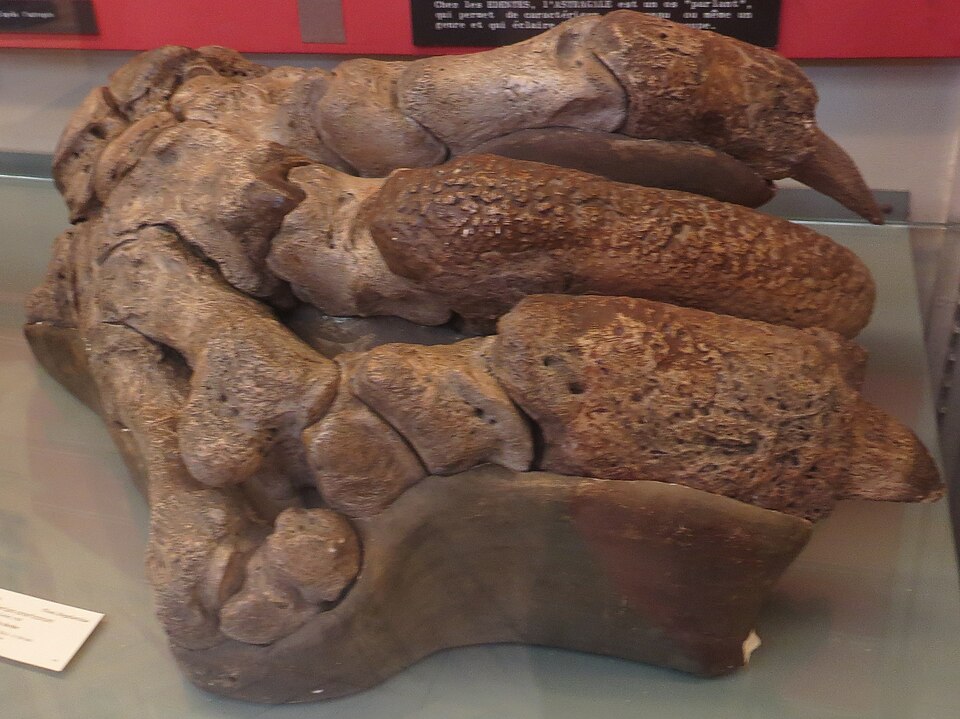
前肢3本・後肢2本に鉤爪
ナックルウォーキングと蹠行性の後肢
前肢には5本の指があり、そのうち中央3本に長大な鉤爪が備わっていました。後肢は4本指のうち2本に鉤爪を持ちます。四足歩行時は爪先を丸めた握り拳のような「ナックルウォーキング」で歩行し、後肢は足裏全体を接地する蹠行性(せきこうせい)でした。前肢の握り拳歩行は、鉤爪が地面と擦れて摩耗するのを防ぐ独自の適応です。
直立して枝を引き寄せる採食
採食時は後肢と尾で三点支持して立ち上がり、鉤爪付きの前肢で木の高い枝を引き寄せました。かつては長い舌で葉を巻き取ったとされてきましたが、近年の研究では舌骨(ぜっこつ)の形態と長さから舌の突出には限界があったと推定されており、代わりにクロサイに似た厚い可動性のある上唇で葉を巻き取ったと考えられています。前肢の分析からも、鎖骨の損傷痕から木の幹に体を支えて枝に届いていた行動が読み取れます。
防衛武器としての鉤爪
刺突武器としての効果
前肢の骨格解析からは、M. americanum は前肢を素早く強く伸ばす能力があり、鉤爪は効果的な「刺突武器」として機能した可能性が示されています。この動作は身を守るための行動と推定されており、現生の樹上性ナマケモノが同様に鉤爪で捕食者に反撃する姿を延長したものと考えられます。3トン級の体格に加えて長大な鉤爪の一撃は、当時の捕食者にとって充分な威嚇でした。
葉食性の巨大草食獣
木の葉・小枝・果実を選ぶブラウザー
同位体分析が示す純草食性
かつては雑食性という説もありましたが、化石歯の同位体分析(炭素・窒素)から、メガテリウムは純粋な草食性であったことが支持されています。M. americanum は木の葉・小枝・果実を選択的に食べる「ブラウザー(葉食性)」で、時と場所によっては草も食べていた個体もあると示されました。糞化石にはファビアナ・エフェドラ・ジュネリアなどのパンパの低木・草本の残渣が含まれています。
アボカドとの「共進化」
アボカドは、メガテリウムなどの大型動物との「共進化」の産物と考えられています。アボカドの大きな種子は現生の動物には飲み込めない大きさで、メガテリウム級の巨獣に丸ごと食べてもらい、遠方で糞と一緒に排出されることで種子散布を担う戦略でした。メガテリウムがアボカドの葉と果実を食べる代わりに、アボカドは種子を運んでもらう──絶滅した現在もアボカドは、この「時代錯誤の生存戦略(evolutionary anachronism=進化のアナクロニズム)」を保ち続ける残存者として知られています。
歯とあごの構造
エナメル質のない常生歯
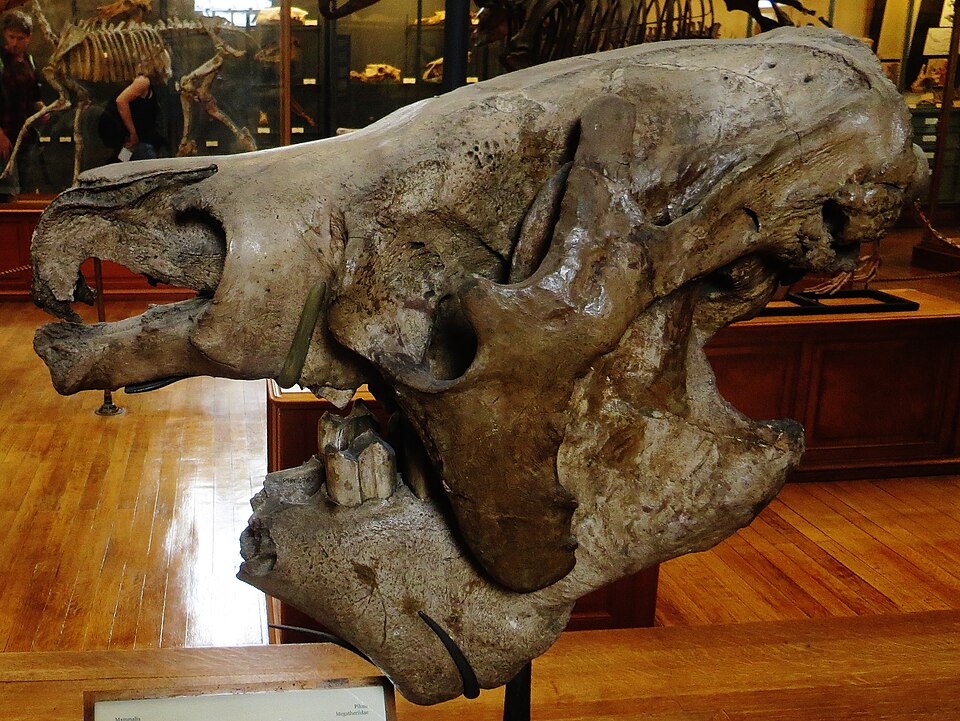
歯には他の異節類と同じくエナメル質がなく、生涯にわたって伸び続ける常生歯(じょうせいし)でした。上顎に5本・下顎に4本と歯数が減っていますが、M. americanum の歯はV字型の鋭い溝で上下がかみ合う自己研磨型の構造をしており、齧歯類の切歯に似た働きをしました。前歯(門歯)は完全に失われており、その代わりを厚く可動性のあるクロサイ型の上唇が務めていたと考えられます。
強い咬筋と垂直方向の噛みつき
顎弓は発達し、咬筋(こうきん)は非常に強力でした。頭骨と顎の形態は「垂直方向の強い噛みつき」への適応を示しており、噛み切るというより葉や根茎をすり潰す動きに特化していたとされます。頭骨の内部には広い副鼻腔があり、脳のスペースは体のサイズに比べて相対的に小さかったことが分かっています。
南米大陸に限定された分布
アルゼンチン・ウルグアイ・ボリビアが中心
パンパの草原と乾燥ステップ
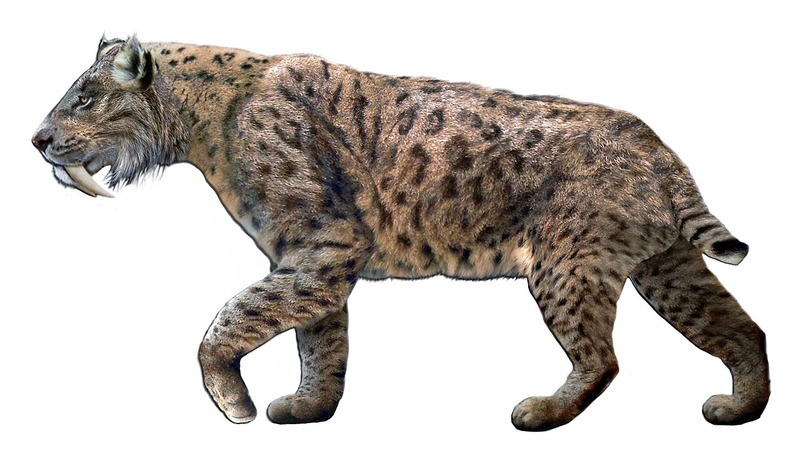
M. americanum の化石はアンデス山脈の東側の低地、アルゼンチン北部・ウルグアイ・パラグアイ・南ボリビア・ブラジル南部のパンパ地帯を中心に発見されています。最終氷期のパンパ地方は現在よりも乾燥した気候で、草を主体としたステップに疎林が混じる環境が広がっていました。この開けた景観のなかで、メガテリウムはグリプトドン類やスミロドンなどのメガファウナと共存していました。
アンデス地域の別亜属 Pseudomegatherium
ボリビア・ペルー・チリのアンデス山脈周辺には、Pseudomegatherium 亜属に属する複数の別種(M. celendinense・M. medinae・M. sundti など)が生息していました。これらは高地に適応した集団で、体格は M. americanum と同等の大型のものから約1トン級の小型のものまで幅があります。同じ属のなかでも生息地に応じて多様な体格を進化させていたことになります。
近縁のエレモテリウムが北米に進出
アメリカ大陸間大交差の主役たち
近縁のエレモテリウム(Eremotherium)は熱帯南米・中央アメリカ・北米(アメリカ合衆国南部まで)に広がっていましたが、メガテリウム属はそれとは対照的に南米に限定されました。パナマ地峡による南北アメリカ大陸の接続で起きた「アメリカ大陸間大交差(Great American Interchange)」の南進組の代表格がスミロドンなどの捕食者だったのに対し、メガテリウム側は北へ広がらず、代わりにエレモテリウムが同じ生態的地位で北米まで進出したかたちです。
発見の歴史──キュヴィエとダーウィン
1787年 マヌエル・トーレスがアルゼンチンで発見
ルハン川岸で見つかった最初の1体
最初の M. americanum の標本は1787年、現在のアルゼンチン北部を流れるルハン川岸で、ドミニコ会修道士で博物学者のマヌエル・デ・トーレスによって発見されました。ラ・プラタ副王領時代の当時、副王ニコラス・クリストバル・デル・カンポの命令でブエノスアイレスに移送された骨は、現地の先住民族に対して「この動物を知っているか」と問い合わせが行われたと記録されています。翌1788年には7つの木箱に詰められてマドリードの王立自然史陳列室(現マドリード国立自然科学博物館)に送られました。
マドリードでの復元・現在も展示中
マドリードでは剥製師のフアン・バウティスタ・ブルーの指揮で骨格が組み立てられ、1795年ごろには一般公開されました。この骨格は1795年当時の組立てのまま、いまもマドリード国立自然科学博物館に展示されており、世界初のメガテリウムの復元骨格として230年余りにわたって観客を迎え続けています。
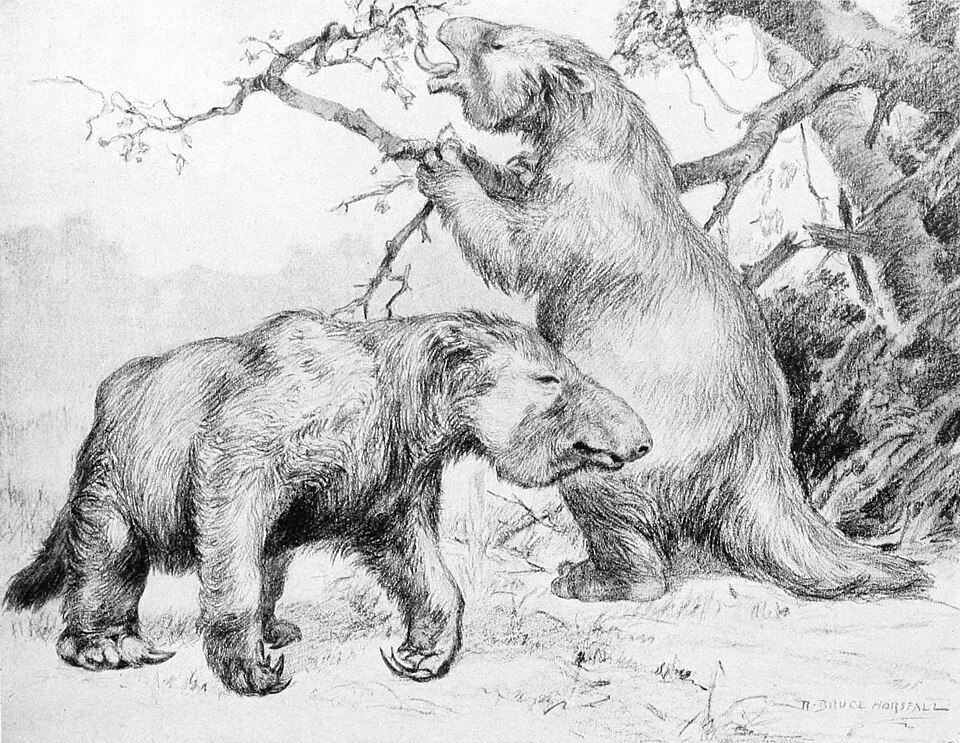
1796年 キュヴィエによる命名
版画だけを見て「巨大ナマケモノ」と看破
マドリードでブルーとエンジニアのホセ・ガリガが1796年に骨格の科学的記載を出版する過程で、その版画がフランス人外交官によってパリの国立自然史博物館へ届けられました。そこで版画を目にしたのが若きジョルジュ・キュヴィエでした。彼は実物を見ることなく、パリ博物館の異節類コレクションとの比較解剖学だけから「これは巨大な地上性ナマケモノであり、すでに絶滅した動物だ」と正しく看破します。
最初に学名を持って記載された化石哺乳類
キュヴィエは1796年、Megatherium americanum の学名を発表しました。属名と種小名の両方を持って科学的に記載された最初の化石哺乳類であり、古生物学史のなかでも記念碑的な位置を占めます。キュヴィエは頭骨の形態・歯式・肩甲骨からナマケモノと判定し、四肢の比率からは走ったり跳んだりはできず、鎖骨と発達した上腕稜(じょうわんりょう)から前肢を「掴む」ために使ったと推定しました。
1830年代 ダーウィンによる新たな標本
ビーグル号航海中に採取
1832〜1833年、ビーグル号での航海中の若きチャールズ・ダーウィンがアルゼンチンで新たな M. americanum の標本を採取しました。同じ航海のなかで、ダーウィンは他の地上性ナマケモノであるスケリドテリウム・グロッソテリウム・ミロドンの化石も発見しています。この時のメガテリウムの頭蓋骨の半分は現在イングランド王立外科医師会のハンテリアン博物館に、もう半分はダーウィンの生家であるダウン・ハウスに所蔵されています。
足跡化石も後年発見
後年、ダーウィンが標本を採取した場所から約40kmの地点で、メガテリウムのものと推定される足跡化石も見つかりました。骨格資料と足跡の両方が揃うことで、二足直立の姿勢・歩き方・体重支持のバランスなどが具体的に議論できるようになっています。
約1万2000年前の絶滅──メガファウナ絶滅の一員
スミロドン・グリプトドンと共存した時代
アメリカ大陸間大交差で北米組が南下
鮮新世末に南北アメリカがパナマ地峡でつながり、ジャガー・ピューマ・剣歯猫スミロドンなどの北米系肉食獣が南米に進出しました。メガテリウムの幼獣はこれらの新たな捕食者に狙われたと推定されていますが、成体の巨体と鉤爪の防衛力によって属としては長期にわたって存続します。同じ環境にはグリプトドン類(大型のアルマジロの仲間)・マクラウケニア・トキソドン・地上性ナマケモノの他属(メガロニクス・ミロドンなど)も共存していました。
ヒトの到達と屠殺跡
屠殺・解体の直接証拠
絶滅の直接的な要因は完全には特定されていませんが、化石には少なくとも1か所、M. americanum が人間によって屠殺・解体された明白な証拠が確認されています。南米各地の考古遺跡ではメガテリウムの骨に石器による切傷や叩き割りの痕跡が残っており、南北アメリカに到達した最初の人類(クローヴィス文化期前後)による狩猟が個体数減少に寄与した可能性が高いと評価されています。
K戦略の弱み──1回1頭の繁殖
メガテリウムはゾウやサイと同じく「K戦略」と呼ばれるゆっくりした生活史をとり、一度に大きな子を1頭だけ産む繁殖様式でした。この繁殖速度の遅さは、大型の捕食者が存在しない環境では有利ですが、人間の狩猟による集中的な圧力に対しては極端に脆弱です。餌動物の減少・気候変動・狩猟が重なった結果、南米大陸で数百万年生き続けたメガテリウム属は約1万2000年前に姿を消しました。
気候変動と乾燥化
更新世末の環境激変
絶滅の同時期、南米では最終氷期の終了に伴う大きな気候変動が起きていました。乾燥したステップから湿潤な森林への植生転換、大型草食獣の生息面積の縮小など、環境そのものが激しく変化しています。ヒトの狩猟と気候変動、どちらが決定的な要因だったかは今も議論が続いていますが、両者の相乗効果と考える研究者が多くなっています。地上性ナマケモノ全体で見ても、この時期以降に存続できた種はほぼおらず、現生の樹上性ナマケモノ2科に系統が絞られました。
現生ナマケモノとの関係
ミツユビナマケモノ属が最も近い親戚
2019年のミトコンドリアDNA解析
M. americanum の博物館標本から抽出したミトコンドリアDNAの解析(2019年 Delsuc らの研究)から、メガテリウムに最も近い現生の親戚は、現生ナマケモノのうちミツユビナマケモノ属(Bradypus)であることが示されました。フタユビナマケモノ属(Choloepus)とは別系統になり、樹上性ナマケモノ2属が別々の地上性ナマケモノから独立に樹上生活へ移行したという興味深い進化史が浮かび上がっています。
3000万年前に分岐したメガテリウム科
メガテリウム科は他のナマケモノ科から漸新世(約3000万年前)に分岐したと推定されています。属としての Megatherium 自体は鮮新世(少なくとも360万年前)にボリビアとパンパで最初の化石が現れ、そこから10種前後を分岐させながら約350万年にわたって南米に君臨しました。
日本文化とメガテリウム
児童書と博物館展示
「古代の巨大ナマケモノ」の代表として
日本ではメガテリウムは、マンモス・スミロドン・ダイアウルフと並ぶ「古代の巨大哺乳類」の代表として児童書や図鑑で紹介されてきました。今泉忠明監修の恐竜・古生物系の児童書や小学館NEO『大昔の生きもの』などが主要な情報源で、環境教育の題材として学校の副読本にも登場します。国立科学博物館(東京・上野)の地球館では復元骨格が展示されており、子どもたちに人気の展示物の一つになっています。
ゲームや創作での「巨大ナマケモノ」
近年ではオンラインゲーム『ARK: Survival Evolved』のテイム可能生物としても登場し、若い世代のあいだで名前が知られるようになりました。二足で立ち上がる姿と長い鉤爪の印象は、絶滅動物のなかでも視覚的なインパクトが強く、児童書・図鑑・ゲーム・映画などさまざまなメディアで繰り返し取り上げられ続けています。
関連ページ


参考
- Wikipedia (en): Megatherium(発見史・分類・体格・食性・絶滅要因)
- Cuvier, G. (1796) “Notice sur le squelette d’une très-grande espèce de quadrupède inconnue jusqu’à présent, trouvé au Paraguay, et déposé au cabinet d’histoire naturelle de Madrid” Magasin Encyclopédique(原記載)
- Bargo, M.S. et al. (2006) “Muzzle of South American Pleistocene ground sloths (Xenarthra, Tardigrada)” Journal of Morphology 267: 248-263(クロサイ様の可動上唇の推定)
- Delsuc, F. et al. (2019) “Ancient Mitogenomes Reveal the Evolutionary History and Biogeography of Sloths” Current Biology 29: 2031-2042(ミツユビナマケモノ属との近縁性)
- Fariña, R.A. et al. (2013) Megafauna: Giant Beasts of Pleistocene South America Indiana University Press(南米更新世メガファウナの包括的総説)
- Natural History Museum (London): What was Megatherium?(発見史とダーウィン標本)
画像出典
- アイキャッチ(生体復元): Nobu Tamura, CC BY-SA 4.0, via Wikimedia Commons
- ロンドン自然史博物館の全身骨格: Ballista, CC BY-SA 3.0, via Wikimedia Commons
- 鉤爪と後足の化石: Ghedo, CC BY-SA 4.0, via Wikimedia Commons
- 頭骨(パリ古生物ギャラリー): Ghedo, CC BY-SA 4.0, via Wikimedia Commons
- 二足直立姿勢(生体復元・カラー): ДиБгд at Russian Wikipedia, Public domain, via Wikimedia Commons
- 毛皮なし復元(草原の2頭): Marcus Burkhardt, CC BY 3.0, via Wikimedia Commons
- 四足歩行姿の生体復元: Sphenaphinae, CC BY-SA 4.0, via Wikimedia Commons
- 古典博物画(R. Bruce Horsfall): R. Bruce Horsfall, Public domain, via Wikimedia Commons