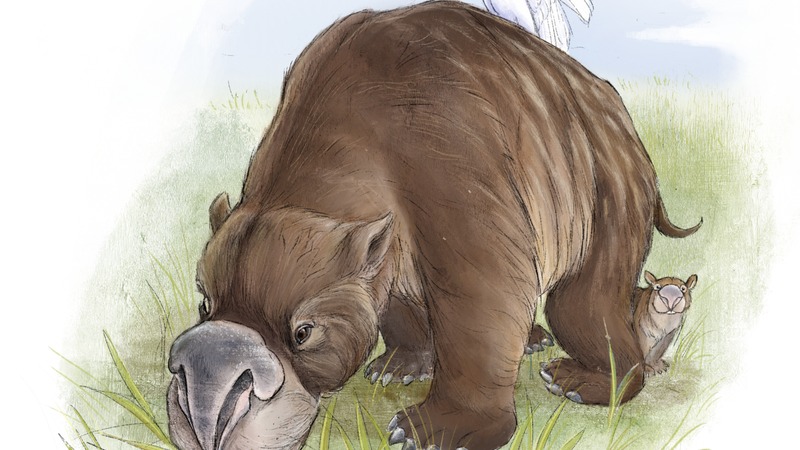
ディプロトドンは、更新世のオーストラリアに生息した史上最大の有袋類です。肩高は2m近く、体重は平均で約2.8トンとされ、現生のコアラやウォンバットと系統をたどればつながります。ヨーロッパから人類が入植する前、大陸のほぼ全域に群れで暮らし、約4万年前に姿を消しました。
分類と学名
分類階層
- 界:動物界 Animalia
- 門:脊索動物門 Chordata
- 綱:哺乳綱 Mammalia
- 下綱:獣亜綱 有袋下綱 Marsupialia
- 目:双前歯目 Diprotodontia
- 亜目:ウォンバット型亜目 Vombatiformes
- 科:ディプロトドン科 Diprotodontidae
- 属:ディプロトドン属 Diprotodon
- 種:ディプロトドン Diprotodon optatum(Owen, 1838)
和名・英名
- 和名:ディプロトドン
- 英名:Diprotodon(giant wombat の通称もある)
別名・学名の由来
属名 Diprotodon はギリシア語 di(二)+prōtos(前)+odōn(歯)に由来し、上下の顎から前方へ強く突き出た大きな切歯を指しています。日本語では「二本の前歯」と訳されます。種小名 optatum は「望まれた」の意で、当時の古生物学が待ち望んだ大型有袋類の標本という位置づけを反映した命名とされています。かつては大きさや産地の違いから複数種に分けられていましたが、2000年代以降の再検討で成体・幼体・雌雄差の変異と整理され、更新世オーストラリアのディプロトドンは全て D. optatum の1種にまとめられました。
大きさ・分布などの基本データ
| 大きさ | 頭胴長 約2.75〜3.4m/肩高 約1.6〜1.8m |
|---|---|
| 体重 | 推定約1,150〜3,417kg(平均約2,790kg) |
| 分布 | オーストラリア大陸のほぼ全域(更新世) |
| 生息環境 | 開けた森林・草原・湖沼周辺 |
| 食性 | 草・低木の葉を混食(塩生植物を含む) |
| 分類上の近縁 | 現生ではウォンバット類・コアラ |
| 絶滅時期 | 約4万4,000〜4万年前(更新世末) |
世界最大の有袋類 — 姿と大きさ
全長と肩の高さ
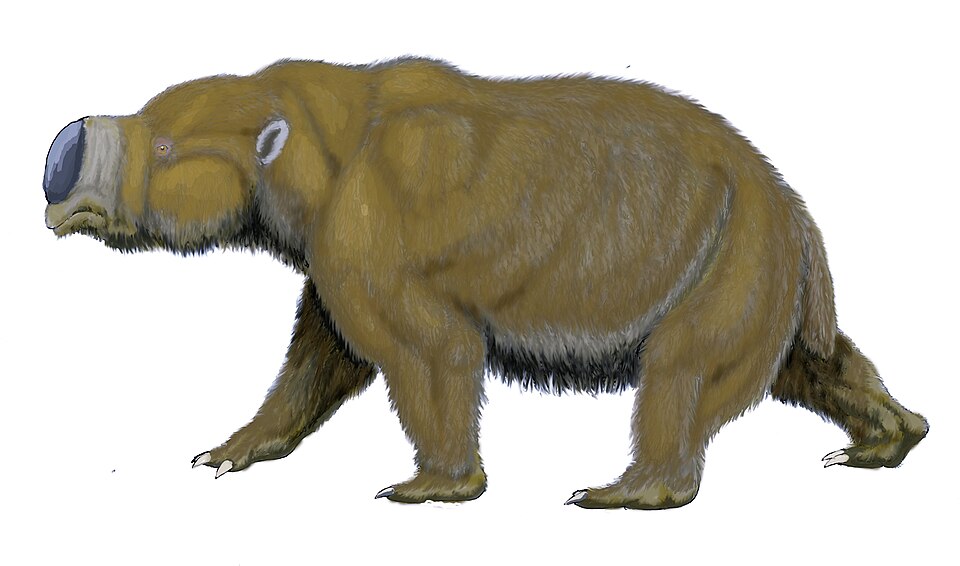
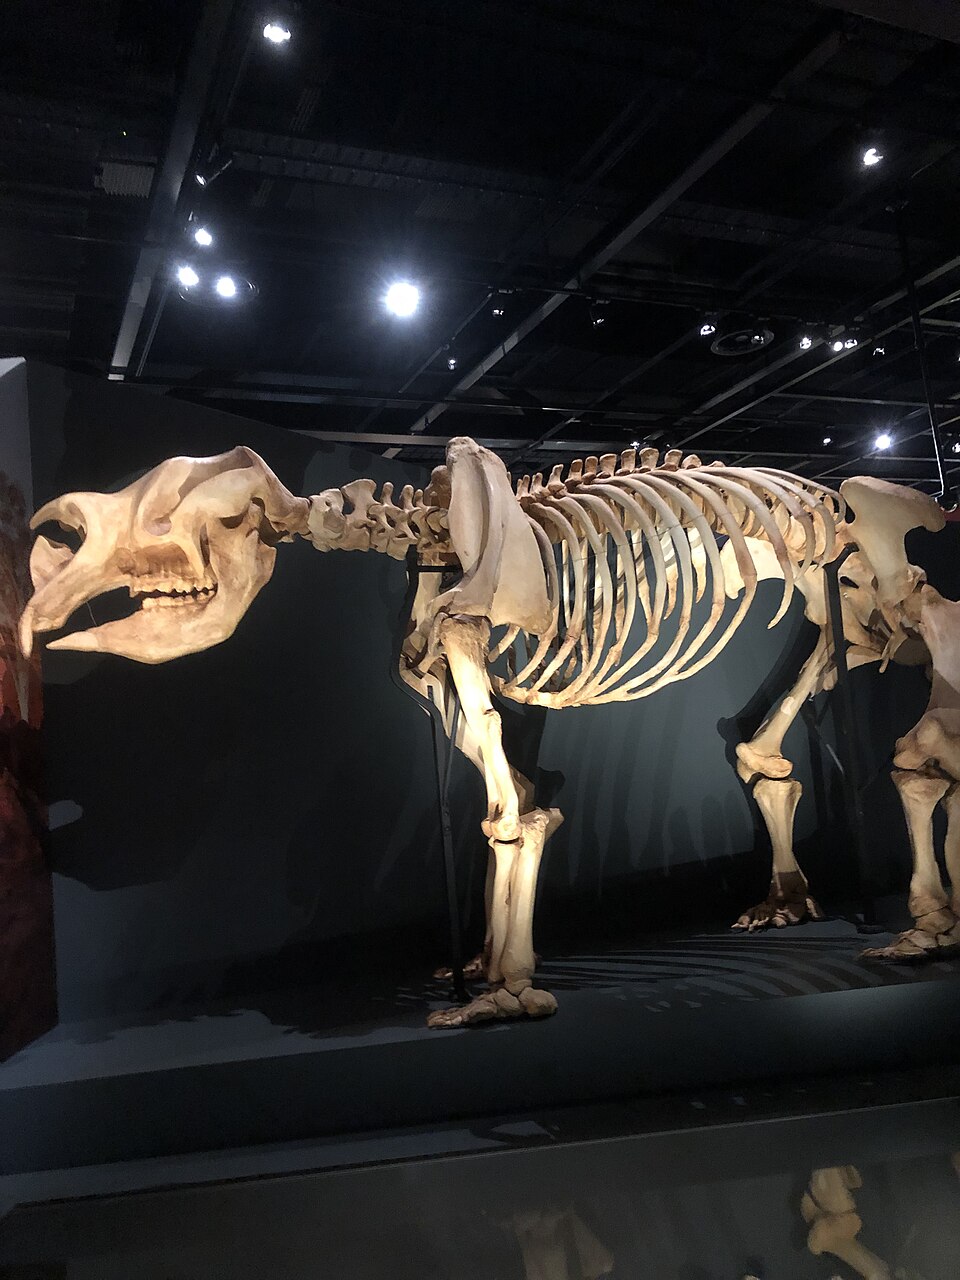
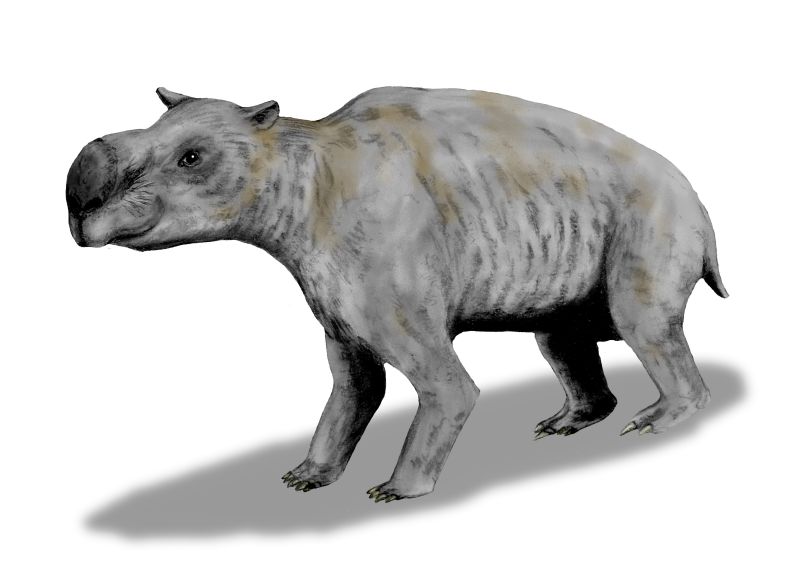
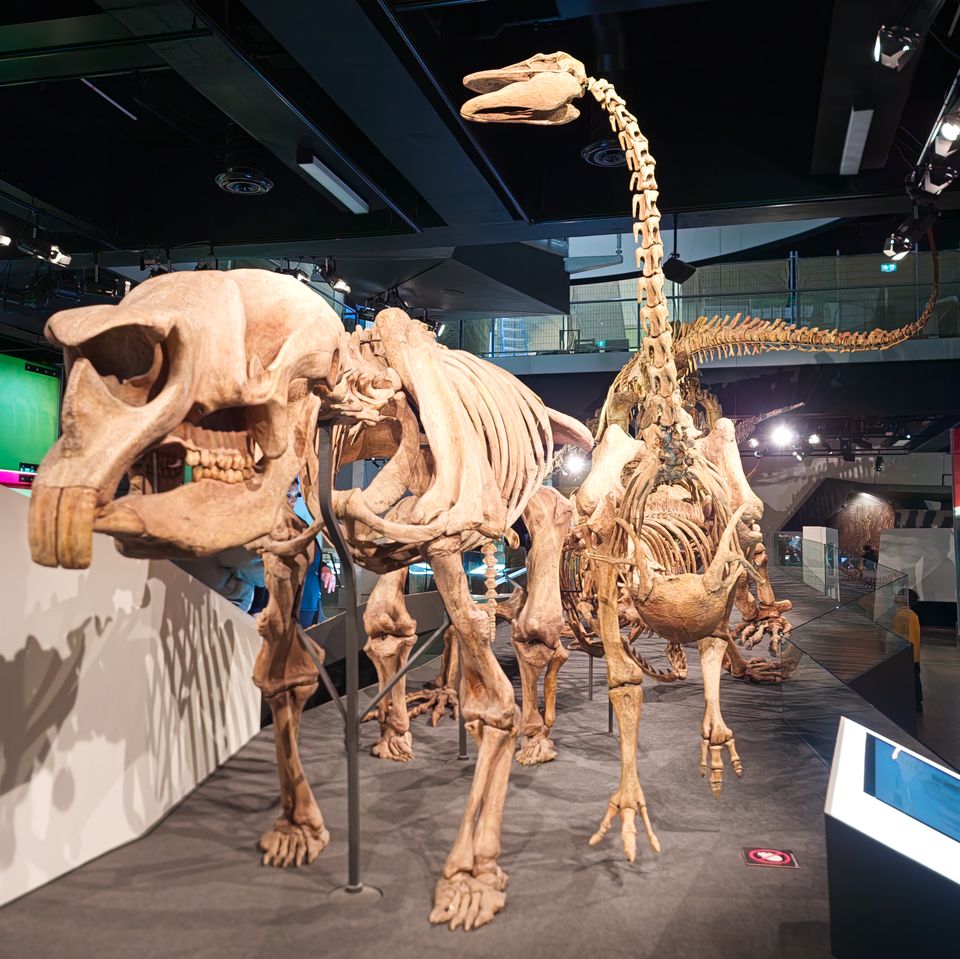
ディプロトドンの頭胴長は約2.75〜3.4mで、肩高は1.6〜1.8mに達したとされます。頭骨は前後に長く、長さ約70cm。四肢は柱状に太く、ゾウのように体を真下から支える柱の構造で、この大きさの陸生哺乳類として合理的なつくりでした。尾は他の大型有袋類に比べて短く、体全体の輪郭は「巨大なウォンバット」という表現がよくあてはまります。
どのくらいの重さだったか
体重は骨の断面から推定され、下は約1,100kgから上は3,400kg超まで幅があります。ウォンバット類の骨格を基準にした従来型の推定と、四肢骨の断面積から体を支える力を逆算する新しい推定とで数値が離れる点が理由です。
推定値に幅がある理由
推定に用いる基準動物によって答えが揺れます。近縁のウォンバットは体重20kg級で、その比例則をディプロトドンに引き伸ばすと下限寄りの値が出ます。一方でサイやカバなど同程度の大きさを持つ現生獣を基準にすると、上限寄りの値になります。近年は複数の推定法を組み合わせ、成体で1,150〜3,417kgのレンジで示すのが一般的です。
平均でおよそ2.8トン
複数個体の推定を平均すると、成体で約2,790kgに落ち着くとされます。史上判明している有袋類のなかで最重量で、次点は同じディプロトドン科の Zygomaturus 属(1t前後)とされます。哺乳類全体で見ても、大型のサイやカバに近い規模の陸上生活者でした。
学名「二本の前歯」の意味
属名の Diprotodon は「二つ/前/歯」を意味し、上顎と下顎の前方に大きな切歯が2対突き出た形態を指します。この前歯は生涯にわたって伸び続けるオープンルート型で、ウォンバットやゲッ歯類と同じ仕組みでした。奥歯は横方向の畝が高く発達したロフォドント型で、線維質の草や葉をすり潰すのに向いた構造です。
生息環境と食性
オーストラリア大陸のほぼ全域に分布
化石は西オーストラリア州のダーリング山地から東海岸のニューサウスウェールズ州にかけて、大陸のほぼ全域から見つかっています。特に南オーストラリア州のカラボンナ湖では、湖底の粘土に足を取られた個体群がまとまって産出したことで知られます。生息環境は現代の乾燥地とはやや異なり、更新世当時は湖沼が広く水を湛え、その周辺にユーカリなどの疎林と草原が広がっていたと復元されています。
何を食べていたか(草と低木の葉)
歯のすり減り方や胃内容物の化石、そして骨に残った同位体の比率から、ディプロトドンは草と低木の葉を状況に応じて食べ分ける混食者だったと考えられています。乾燥地帯では塩生植物を、湿潤な地域ではイネ科の草本を主体にする、といった柔軟な採食パターンが復元されています。
乾燥地ではソルトブッシュを食べた
特に乾燥地の個体では、塩分に強い低木ソルトブッシュ(アカザ科の Atriplex や Maireana)を主体にしていた痕跡が歯の摩耗パターンから読み取れます。塩生植物はカリウムや塩化物を高濃度で含み、通常の草食動物には忌避されやすい餌ですが、ディプロトドンは腎機能でこれを処理していた可能性が指摘されています。
歯の分析でわかる幅広い食べもの
歯のエナメル質に残った炭素同位体を測ると、C3型(低木や樹葉)とC4型(乾燥地のイネ科)の両方が検出されました。地域や季節で組み合わせが変わり、単一の植生に依存する専門家ではなかったと解釈されています。この幅広さは、大陸全域に分布を広げられた要因の一つとみられます。
200km往復の季節移動
クイーンズランド州の一体では、歯のストロンチウム同位体分析から、ある個体が年ごとに約200km前後を往復していた可能性が示されました。コンダマイン川沿いに乾季と雨季で餌場を切り替える往復移動と解釈されており、これは有袋類として異例のスケールです。現生ではヌーやカリブーのような大型偶蹄類・鯨偶蹄類に見られる行動で、ディプロトドンが群れとして遠距離を動いていた姿が推定されています。
コアラ・ウォンバットとの近縁関係
コアラ・ウォンバットと同じ枝の系統
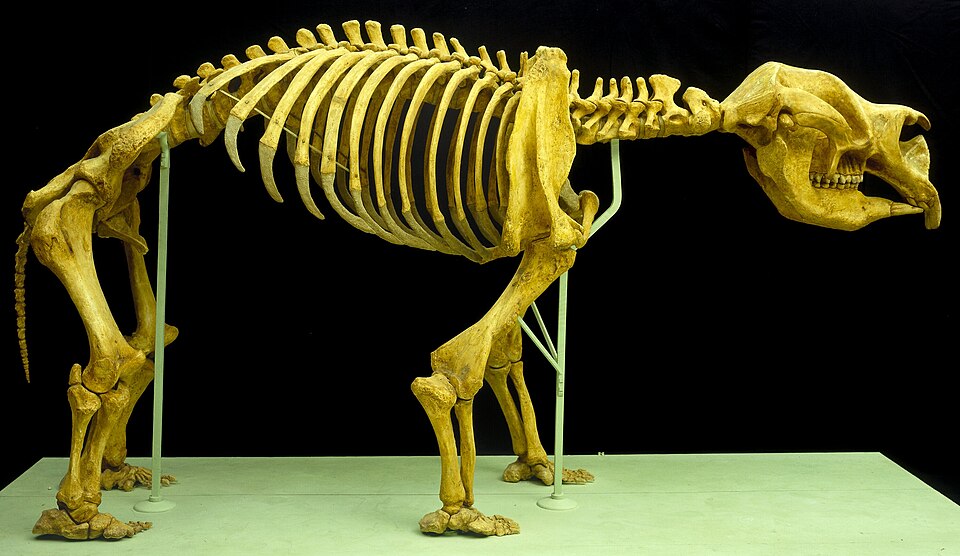
ディプロトドンは分類上、双前歯目のなかのウォンバット型亜目(Vombatiformes)に属します。同じ亜目にはコアラ科・ウォンバット科の現生種のほか、絶滅した大型有袋類の系統(Palorchestidae・Thylacoleonidae など)が並びます。カンガルー類は同じ双前歯目でも別亜目に含まれるため、いわゆる「跳ぶ有袋類」より、地面を四つ足で歩くコアラ・ウォンバットに近い間柄です。
現生ウォンバット・コアラの姉妹群
ウォンバット型亜目の現生種は、コアラ科(1種)とウォンバット科(3種)に限られます。ディプロトドン科はこの2系統の姉妹群に位置づけられ、白亜紀末以降のオーストラリアで独自に大型化した枝と考えられています。したがって「巨大なウォンバット」という比喩は雑駁ですが方向性としては正しく、実際に頭骨や歯列にウォンバットと共通する形質が多く見られます。
後ろ足の指がくっついた共通の特徴
後肢の第2指と第3指の骨が皮膚の中で癒合する「合指症」は、双前歯目に共通する特徴です。ディプロトドンでも後足の指骨にこの構造が確認され、コアラ・ウォンバット・カンガルーと同じ祖先形質を継いでいる証拠になっています。癒合した2本の指は、生前は毛づくろい用の櫛のように用いられていたと推定されます。
発見の歴史 — オーストラリア初の化石哺乳類
ウェリントン洞窟で見つかった骨
1830年、ニューサウスウェールズ州のウェリントン洞窟で農夫のジョージ・ランケンが最初の骨を発見しました。翌年から測量士のトマス・ミッチェルによって系統立った発掘が行われ、大型哺乳類とみられる歯や下顎骨が英国へ送られました。当時のオーストラリアは化石研究がほぼ手つかずの地域で、この一連の資料はヨーロッパの学界に衝撃を与えました。
リチャード・オーウェンが1838年に命名
ロンドンに届いた化石を1838年に検討したのが、比較解剖学者のリチャード・オーウェンでした。オーウェンは前方に張り出した切歯の形からギリシア語で「二つの前歯」を意味する Diprotodon を属名として提案し、正式に記載しました。オーストラリア産の化石哺乳類として最初に学名が与えられた種で、この命名は同じくオーウェンによる「恐竜(Dinosauria)」の提唱に先立つ仕事でもあります。
カラボンナ湖から数百体分の化石
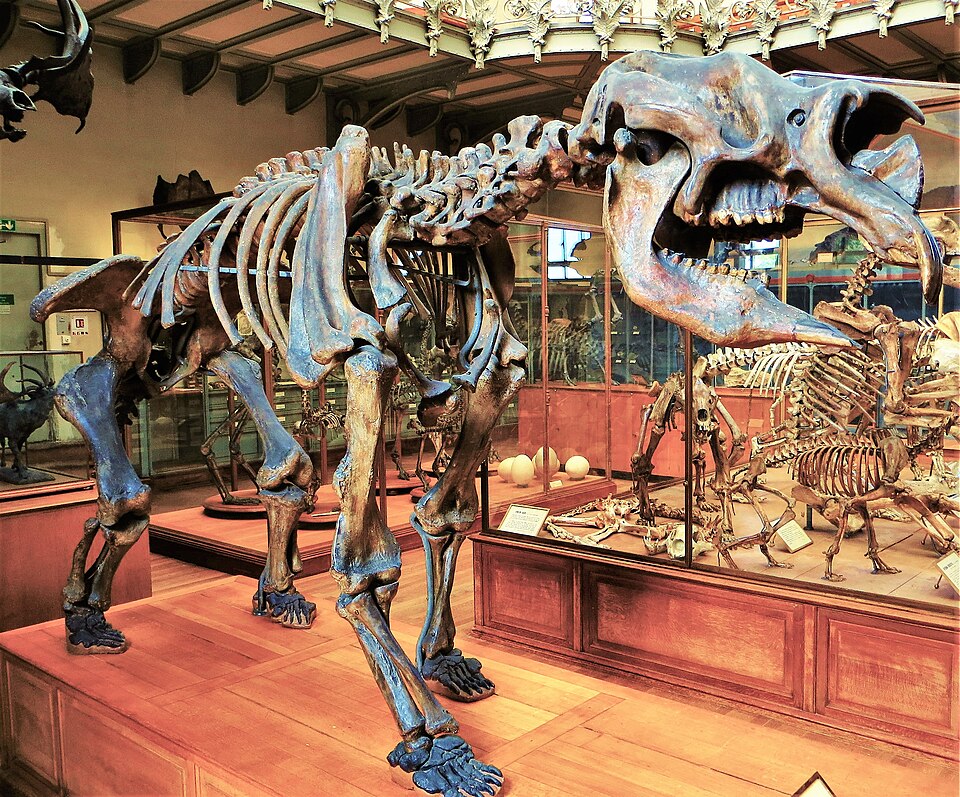
1893年、南オーストラリアのカラボンナ湖で数百体分に及ぶディプロトドンの化石が発見されました。湖底の粘土に足を取られたまま息絶えた個体群と解釈されており、乾季の飲み水を求めて塩湖に踏み入り抜け出せなくなったと考えられています。この産地からは成体・幼体を含む多数の骨格が得られたことで、ディプロトドンの成長段階の変異が明らかになり、後の「1種にまとめる」分類上の判断につながりました。
絶滅の原因をめぐる論争
姿を消した時期 — 約4万4千年前
放射性炭素・ウラン系列・光ルミネッセンスなど複数の年代測定を組み合わせると、大陸各地のディプロトドン化石は約4万4,000〜4万年前を境に途絶えます。この時期はオーストラリアの大型有袋類(メガファウナ)が短期間で一斉に姿を消した「更新世末大量絶滅」の中核期にあたります。
新しい年代測定でわかった絶滅時期
従来はカーボン年代で3万〜1万年前と幅広く見積もる報告もありましたが、汚染された炭素の影響を排したウラン系列・光ルミネッセンス年代を採用すると、絶滅の暦年は約4万4,000年前を中心とする短い区間に収束します。この年代は、次に述べる人類到達との重なりを議論する上での基点になっています。
人類の到達が引き金だったという説
アボリジニの祖先がオーストラリア大陸に到達した年代は、遺跡の発掘から約6万5,000〜5万年前とされています。ディプロトドンの絶滅時期はこの到達からおおむね1万〜2万年後にあたり、両者の時間差を「狩猟による絶滅」の根拠と見る立場があります。年間わずかな捕獲圧でも、繁殖の遅い大型有袋類の個体群は数千年で持続不能になり得るという個体群動態モデルが提示されています。
気候変動が原因だったという説
一方、更新世後期のオーストラリアは長期の乾燥化と気温変動が進行した時期でもあります。餌となる湿潤植生が縮小し、湖沼が塩化して大型草食獣が餌不足に陥ったという説明が古くから提示されてきました。ただし、大陸の多くの地域では絶滅時期が乾燥化のピークと必ずしも一致せず、気候だけで全体を説明するのは難しいとする研究者も多いです。
火入れで景観が変わったという説
人類到達を絶滅の背景としつつ、直接の要因は「狩り」ではなく「火入れによる景観改変」だとする説もあります。乾季の下草を焼く農地管理型の火入れが繰り返された結果、ディプロトドンが好んだ湿潤な低木林が耐火性のスクレロフィル植生(硬葉樹林)に置き換わり、餌資源が失われたとする仮説です。乾湖の堆積物から得られた花粉や炭片の記録が根拠にされます。
バニップ伝承との関わり(先住民の口伝)
オーストラリア先住民の口伝には、湿地や水辺に潜むとされる大型の獣「バニップ」が広く登場します。ディプロトドンの化石を最初に検討した19世紀のヨーロッパ研究者たちは、湖畔の骨と伝承を結びつけ、バニップの原型を古い時代のディプロトドンに求める仮説を提示しました。ただし、これはあくまで西洋側の解釈で、先住民各語族の伝承体系そのものを直接裏づけるものではありません。ディプロトドンの絶滅(約4万年前)から今日までの時間差は極めて長く、口伝が種の記憶を保持し得るかも慎重な検討が必要と考えられています。
参考
- Wikipedia(英語版)「Diprotodon」の該当節(形態・分布・食性・絶滅論争)
- Wikipedia(日本語版)「ディプロトドン」(分類・体サイズ・生息環境)
- Wroe, S., Crowther, M., Dortch, J., Chong, J. (2004) “The size of the largest marsupial and why it matters,” Proceedings of the Royal Society B 271: S34–S36(体重推定の再検討)
- Price, G. J. et al. (2017) “Seasonal migration of marsupial megafauna in Pleistocene Sahul,” Proceedings of the Royal Society B 284: 20170785(歯の同位体分析による季節移動の推定)
- Miller, G. H. et al. (2005) “Ecosystem Collapse in Pleistocene Australia and a Human Role in Megafaunal Extinction,” Science 309: 287–290(火入れ・景観改変説)
- Prideaux, G. J. et al. (2007) “An arid-adapted middle Pleistocene vertebrate fauna from south-central Australia,” Nature 445: 422–425(更新世中期の乾燥適応動物相)