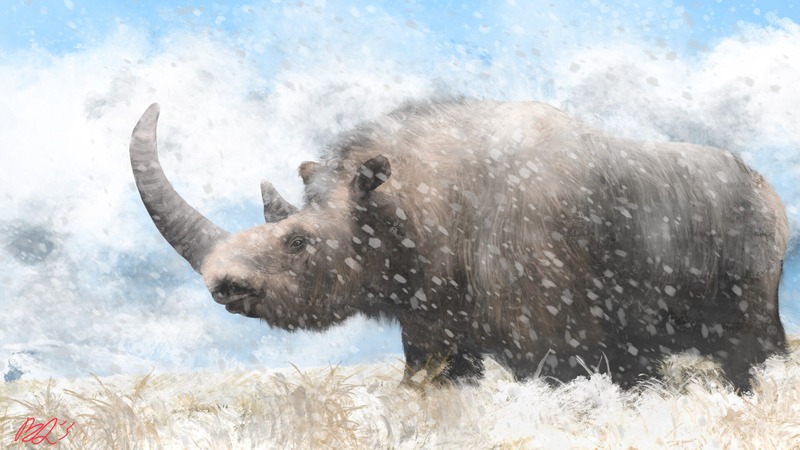
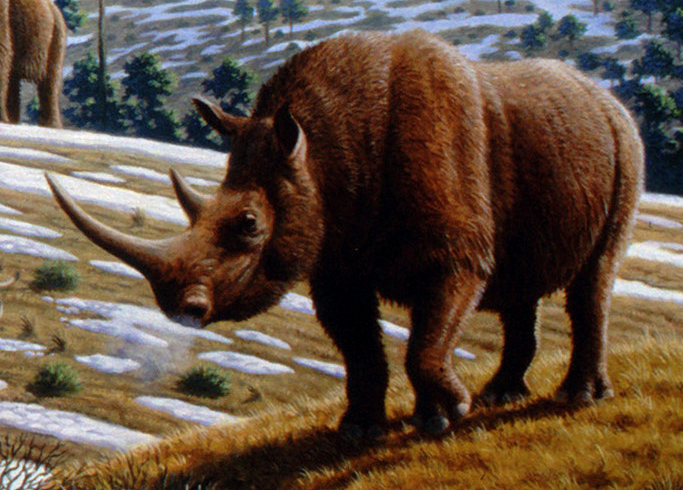
ケサイ(学名 Coelodonta antiquitatis)は、更新世末までユーラシア北部の広大な氷期草原「マンモスステップ」に暮らしていた大型のサイです。全身を厚い毛皮で覆い・鼻先には最大 1.35m にもなる長い角と・そのうしろに小さな二本目の角を持つ姿は、シベリアの凍土から掘り出された完全遺体やヨーロッパ各地の洞窟壁画に今も生き生きと残されています。ヨーロッパでは約 1 万 4,000 年前、シベリアでも同じころ姿を消し、マンモスと同じ時期の温暖化の波のなかで最後の一頭が消えました。
分類と学名
分類階層
- 界:動物界 Animalia
- 門:脊索動物門 Chordata
- 綱:哺乳綱 Mammalia
- 目:奇蹄目 Perissodactyla
- 科:サイ科 Rhinocerotidae
- 亜科:サイ亜科 Rhinocerotinae
- 属:ケサイ属 Coelodonta Bronn, 1831
- 種:ケサイ Coelodonta antiquitatis(Blumenbach, 1799)
和名・英名・シノニム
- 和名:ケサイ(毛犀)/ケブカサイ(毛深犀)ともよばれる
- 英名:Woolly rhinoceros
- 原記載:Rhinoceros antiquitatis Blumenbach, 1799(現属 Coelodonta へ移行)
属名 Coelodonta の意味と近縁関係
1799 年、ゲッティンゲン大学のヨハン・フリードリヒ・ブルーメンバッハが、ロシア・カザンで発掘された頭骨をもとに Rhinoceros antiquitatis として原記載しました。1831 年にはドイツの博物学者ハインリヒ・ゲオルク・ブロンが本種のための新属 Coelodonta を設立します。属名はギリシア語 koilos(空洞の)+ odous(歯)で「空洞の歯」を意味し、臼歯のエナメル質にできる深い襞(ひだ)に由来する呼び名です。分子系統解析によれば、現生種のなかでもっとも近縁なのはスマトラサイ Dicerorhinus sumatrensis で、系統的にはケサイは「毛皮を厚くした氷期のスマトラサイ」にあたる位置づけです。
大きさ・分布などの基本データ
| 大きさ | 体長 約 3.2〜3.8m/肩高 約 1.45〜1.6m/体重 約 1.5〜2.0t |
|---|---|
| 角の長さ | 鼻角 最大 約 1.35m(角軸に反った孤状)/前額の第二角 約 40〜50cm |
| かつての分布 | ユーラシア北部(イベリア半島〜ブリテン島〜東シベリア)/北米には渡っていない |
| 生息環境 | 寒冷で乾燥した草原「マンモスステップ」/短草+薬草状の低い草本群落 |
| 生息年代 | 約 30 万年前〜1 万 4,000 年前(中期更新世末〜完新世直前) |
| 食性 | 短い草を中心にした専門的な草食(グレイザー) |
| 保全状況 | 絶滅(Extinct・約 1 万 4,000 年前ごろ) |
姿と大きさ — 全身毛皮と大小2本の角
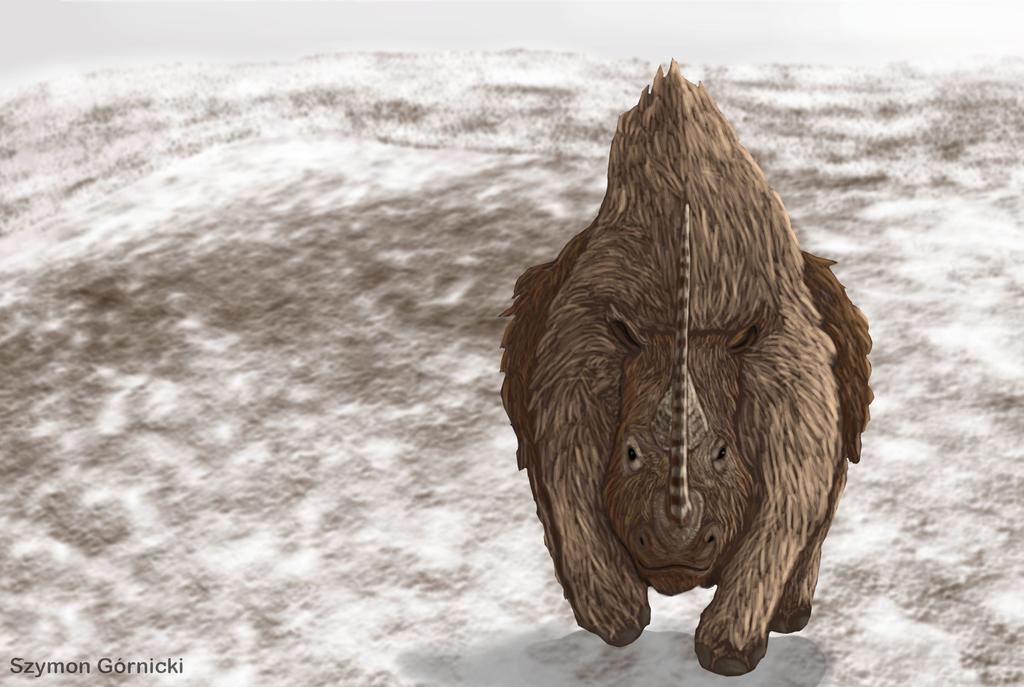
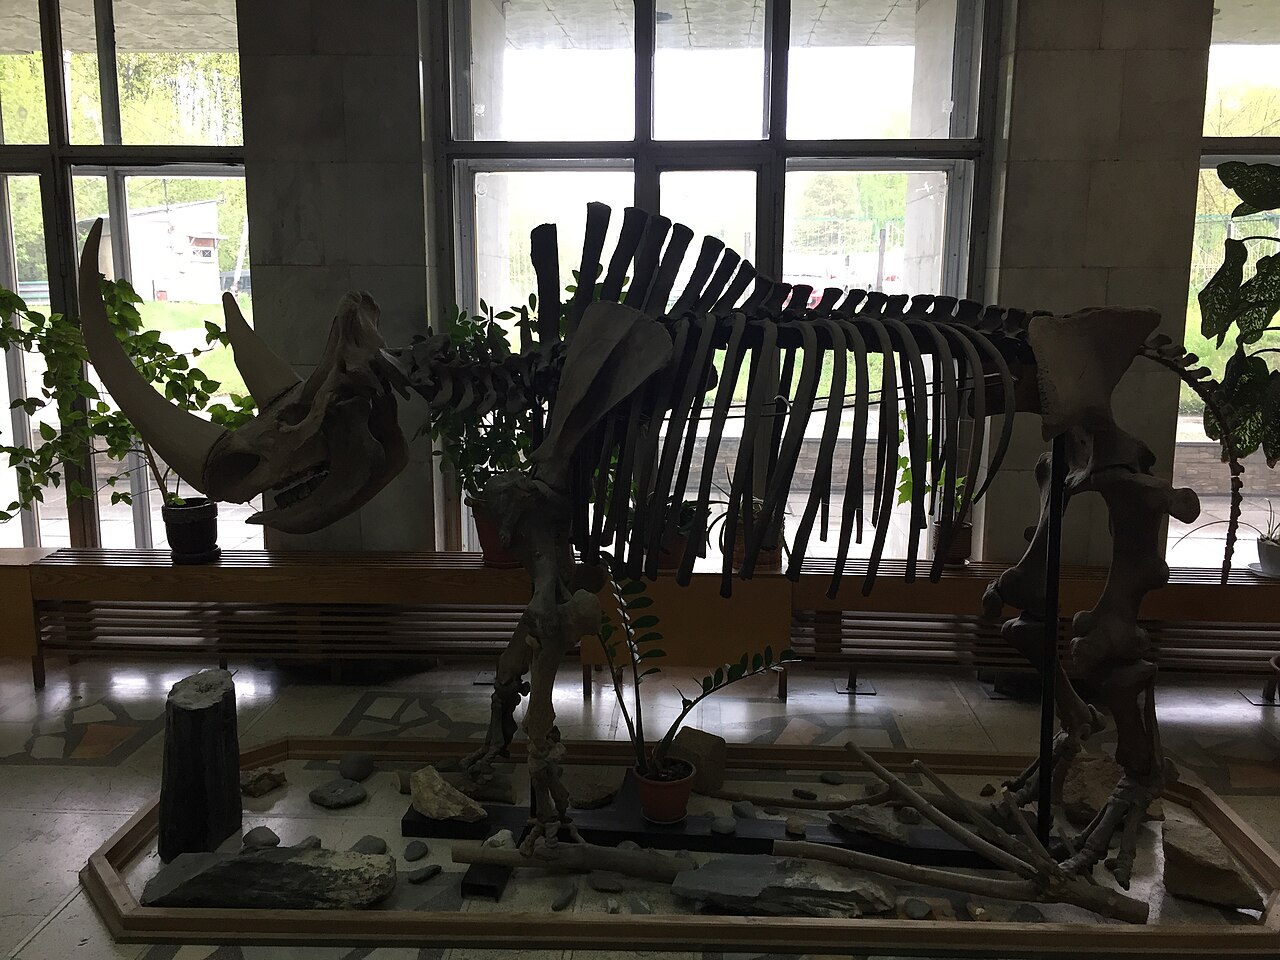
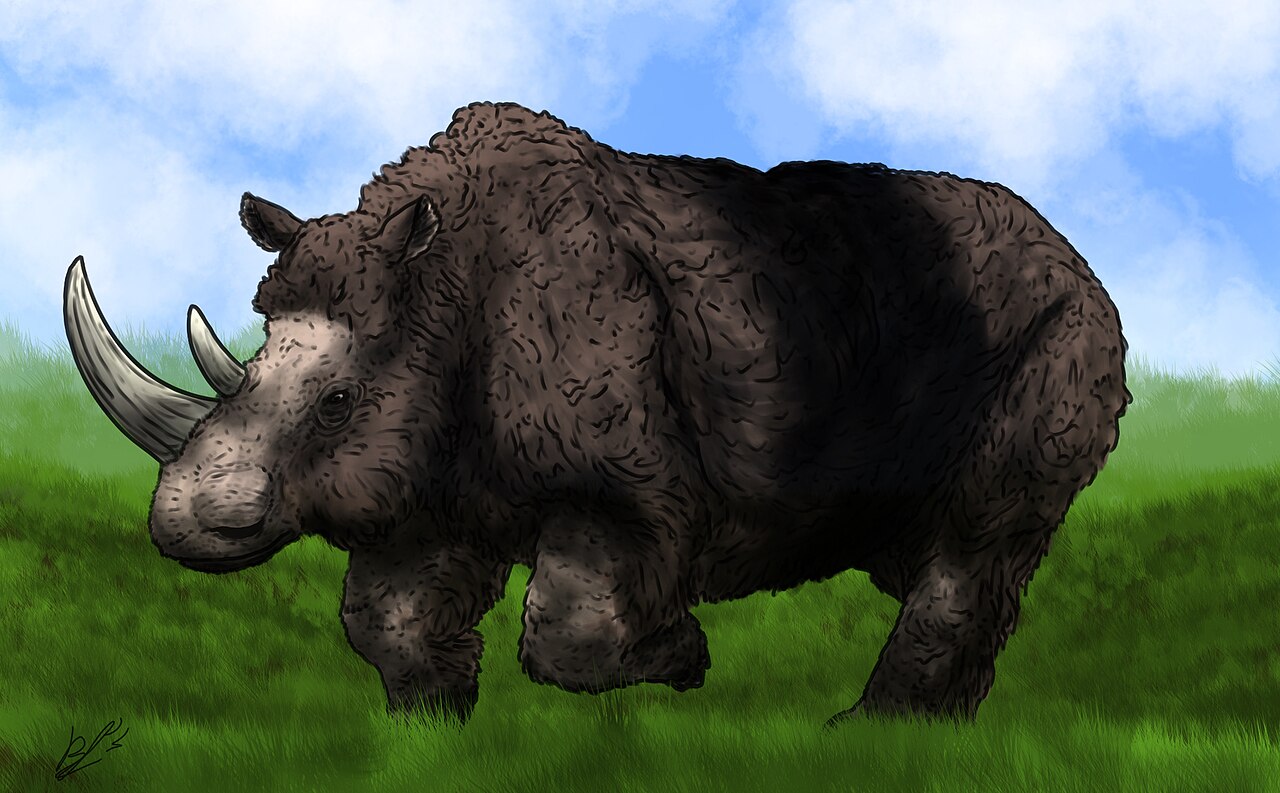
ケサイは体長 3〜4m・体重 1.5〜2 トンの大型サイで、現代のクロサイ(体重 800〜1,400kg)よりひとまわり大きく、シロサイ(1.8〜2.3t)にほぼ並ぶ体格でした。何より目を引くのは、鼻の先から前方に大きくカーブして伸びる 1m 級の鼻角と、そのすぐ後ろに立つ小さめの第二角です。
氷期を生きぬく厚い毛皮
二層の毛と5〜15mmの皮膚
皮膚の上には、長く粗い刺し毛(ガードヘア)と、密度の高い綿毛の二層の毛皮が生えていました。刺し毛の長さは体側で 20cm を超え、腹側ではさらに長くなります。皮膚そのものも厚く、部位によっては 5〜15mm に達しました。ロシア極東やポーランド・ウクライナで発掘された凍結遺体からは、この毛皮と皮膚が実物として残っており、氷期の風雪をしのぐための断熱装備が今も見て取れます。
肩のこぶと寒冷適応
肩の上には脂肪を蓄えた大きなこぶが盛り上がっており、体温維持や食料の乏しい季節の備えに役立ったと推定されます。四肢は短くずんぐりし、体表面積を抑えることで放熱を減らす設計です。厚い皮下脂肪と、毛皮に囲まれた深い体幹は、東シベリアの寒冷極地でも活動できる耐寒能力を備えていました。
鼻角の記録と用途
角はケラチン、化石には残らない
ケサイの角は現生サイと同じくケラチン繊維でできており、通常は化石として残りません。しかし凍結遺体からは実物の角がそのまま出土しており、鼻角で最大 1.35m という記録があります。角軸に沿って軽く反り返るカーブが特徴で、雪や地面をかき分けて草を出すための「除雪機」のような使い方をした可能性が指摘されています。
雄同士の闘争にも使われた
雄同士の闘争でも角が使われたと考えられており、シベリアで発掘された頭骨には角どうしをぶつけあった摩耗痕が残っている個体があります。角の大きさに雌雄差があったかどうかは決定的な結論に至っていませんが、より大型の個体は雄と推定される例が多い傾向です。
マンモスステップの主として
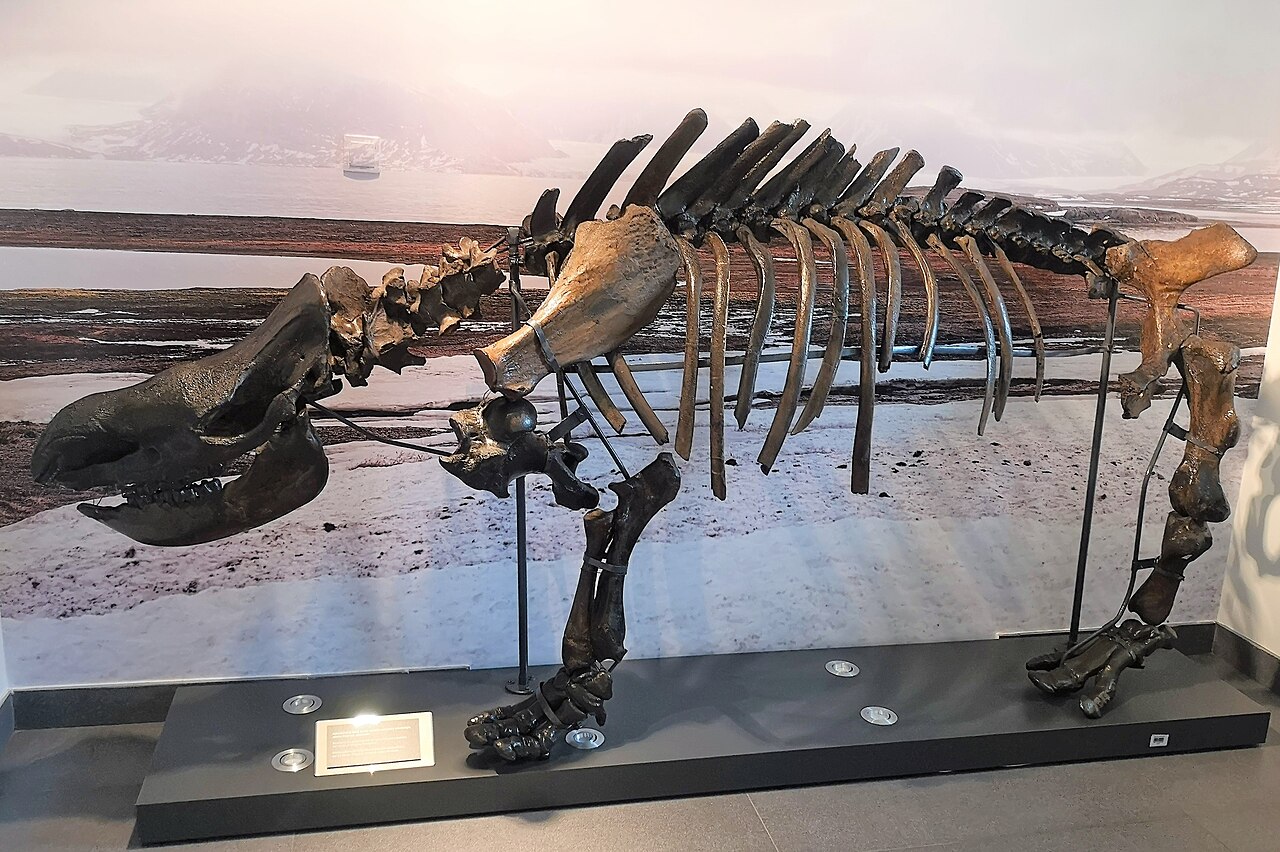
ケサイの化石は、ユーラシア北部のほぼ全域から出土しています。西はイベリア半島とブリテン島、東は東シベリアまで、更新世後期の分布は約 1 万 kmにわたる帯となりました。氷期のこの一帯を覆っていたのが、寒冷で乾燥した草原「マンモスステップ」です。
北米には渡らなかった
ベーリング陸橋を越えなかった理由
マンモスやオオツノジカ・ヘラジカが最終氷期にベーリング陸橋を渡って北米へ達したのに対して、ケサイはこの経路を利用しませんでした。ベーリング一帯の草原は雪と風が強く、草の密度がケサイの採食に必要な水準に達していなかったため、と考えられています。同じマンモスステップでも「北米には向かわないケサイ/向かったマンモス」の対比は、地域による植生の細かな違いを示す一例です。
氷期と間氷期の南北移動
氷期の寒冷化に応じてケサイは分布を南へ広げ、間氷期には北へ後退する南北方向の移動を繰り返していました。ブリテン島のドラマチックなケサイ化石産地(キャンプ・オールト洞窟など)はこの南下期の記録で、リス氷期の終わり(約 13 万年前)以降、記録数が急速に増えていきます。
食性 — 低頭の草食スペシャリスト
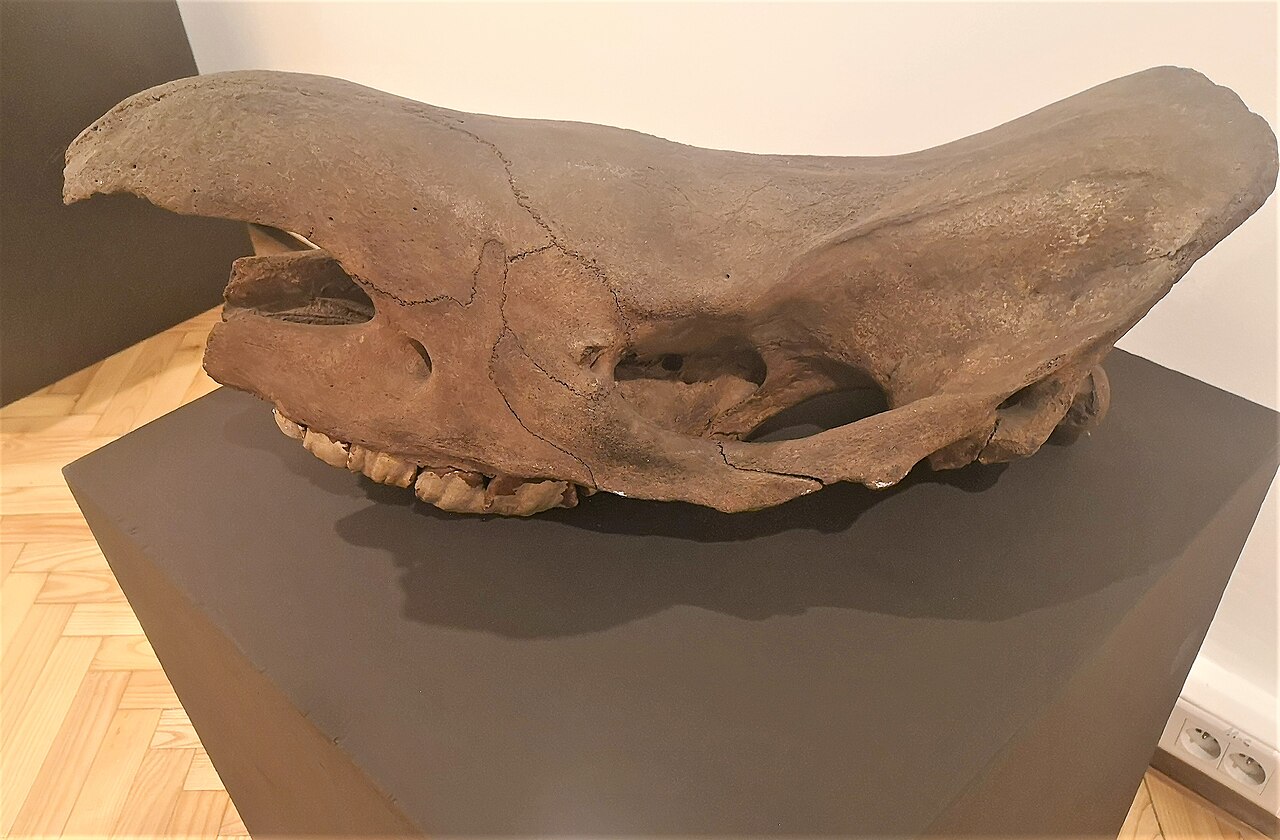
ケサイの頭は低く垂れ、鼻角も前方に長く伸びる「低頭型」で、地面に近い低い草を刈り取る動作に適していました。歯は現代のシロサイと同様の高冠歯(ハイプソドント)で、砂や粉塵を含む乾いた草を大量に噛み砕くための道具立てが整っています。
季節で切り替える食性
夏はイネ科草本・冬は低木の枝
角の年輪状の成長線や歯のエナメル質に含まれる同位体の分析からは・夏はイネ科草本を中心に食べ・冬は雪の下から掘り出した低木の枝葉に切り替えるという季節性が読み取れています。極寒期にも一定の食料を得られる柔軟性が、氷期の厳しい環境で数を維持するうえで重要だったと考えられます。
幼体「サーシャ」の胃内容物
2014 年に東シベリア・ヤクート地方の川岸で発見された生後 7 か月の雄の凍結遺体「サーシャ(Sasha)」の胃からは、生前最後に食べたイネ科草本と低木の若い葉が保存された状態で出土しました。約 3 万 4,000 年前の子ザイの胃の中の草は、彼らが実際に何を食べていたかを直接示す一級の資料になっています。
発見史 — ブルーメンバッハとシベリアの凍土
ケサイが西欧の科学に登場したのは 18 世紀末で、ロシア極東の凍結遺体はさらに 19〜21 世紀にかけて次々と発見されました。ヨーロッパでは 20 世紀初頭のポーランド/ウクライナのスタルニャ産凍結遺体が、21 世紀にはシベリアの子ザイ「サーシャ」が、それぞれ古脊椎動物学の重要資料となっています。
3世紀にわたる標本の蓄積
1799年 Blumenbach の原記載
1799 年、ブルーメンバッハがロシア・カザン産の頭骨を Rhinoceros antiquitatis として記載しました。同じ 1799 年にオオツノジカの命名も行っており、ヨーロッパの博物学が氷期のメガファウナを次々と学問の対象にしていく時代の始まりを象徴する年でもあります。
1907年・1929年 スタルニャ産凍結遺体
1907 年と 1929 年、現在のウクライナ西部スタルニャのタール鉱床から、皮膚と毛皮を残す成体の凍結遺体が相次いで発掘されました。ヨーロッパでケサイの毛皮が実物として得られた初めての事例で、リヴィウ国立博物館(現在のリヴィウ自然史博物館)に現在も収蔵されています。
2014年 東シベリアの子ザイ「サーシャ」
2014 年、ロシア・ヤクート地方の川岸崩壊面から生後 7 か月の子ザイの凍結遺体が見つかり、「サーシャ」と名づけられました。年代測定でおよそ 3 万 4,000 年前と判明しました。幼体の毛皮の色や柔らかさ・まだ小さな第二角の芽など・成体標本では分からない発達段階の情報がまとめて得られています。
ショーヴェ洞窟と旧石器時代の記録
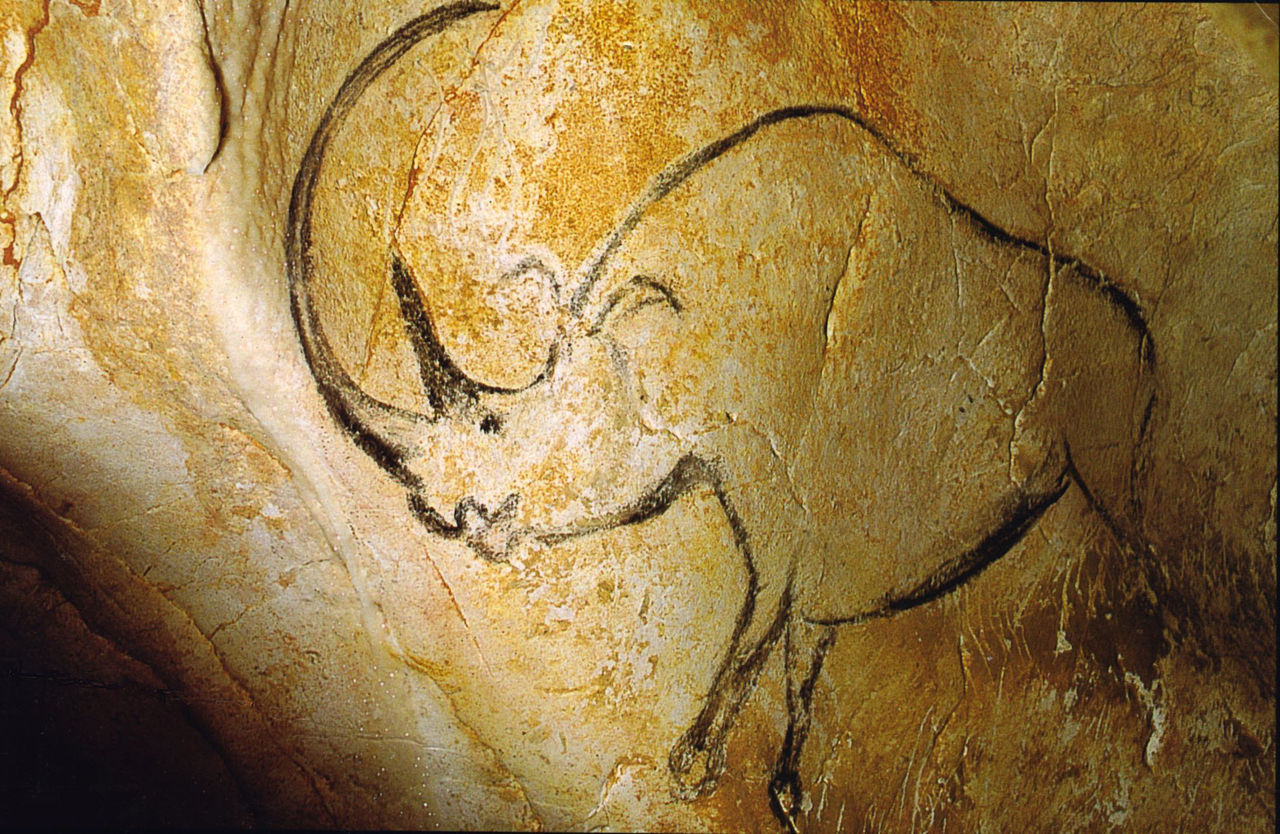
ケサイは、旧石器時代の人類にとっても身近な巨獣でした。ヨーロッパ各地の洞窟壁画では、マンモスとならんで頻繁に描かれる対象となり、狩猟の道具や装身具の素材にもなっています。
約3万年前の人類の目に映った姿
ショーヴェ洞窟の65点
フランス南部のショーヴェ洞窟(約 3 万 2,000 年前)には、これまでに 65 点以上ものケサイの壁画が確認されています。特徴的な低い頭・盛り上がった肩・長い鼻角と後方の小さな第二角がしっかり描き分けられており、氷期の人類がこの動物を頻繁に観察していたことがうかがえます。ルフィニャック洞窟(フランス)やペシュ・メルル洞窟にも同様のケサイ壁画があります。
ヤナ・ライノホーン遺跡の道具
ロシア・ヤナ川沿いの旧石器遺跡「ヤナ・ライノホーン(サイの角)遺跡」からは、約 2 万 7,000 年前にケサイの角そのものから削り出された槍投げ器が見つかっています。ケサイの角が単なる狩りの対象を越えて、道具の素材として計画的に利用されていた具体的な例です。
神話に姿を変えた記憶
「巨大な鳥のかぎ爪」という誤解
ケサイが絶滅したあと、シベリアの先住民が凍土から掘り出された巨大な角と骨を「巨大な鳥のかぎ爪」や「地下に住む竜」の遺物と解釈した記録が、ヤクートやチュクチの伝承に残ります。地下から出てくる巨獣の骨や角が、氷期の記憶ではなく神話として語り継がれた点で、この動物の遺骸は文化史にも足跡を残しました。
絶滅への道 — 1万4,000年前の温暖化
ケサイの化石記録は、最終氷期の終わりに向けて急速に途絶えていきます。ヨーロッパ大陸では約 1 万 7,000〜1 万 5,000 年前の間に姿を消し、東シベリアでも同じころ、最後の集団が消えていきました。
最後の記録と温暖化仮説
2012年 Stuart & Lister の年代測定
2012 年、Stuart と Lister はケサイの化石群を大規模に放射性炭素年代測定し、確度の高い最後の記録がウラル地方で約 1 万 4,200 年前・東シベリアで約 1 万 4,000 年前まで下ることを示しました。この時期はボーリング–アレレード温暖期にあたり、氷期草原が縮小して森林と湿地が広がっていく変化と重なります。
草原の消失が主因
温暖化に伴う降水量の増加は、ケサイが好んだ短草の草原を低木や樹林に置き換えていきました。低頭型で短草に特化した本種にとって、この植生変化は致命的だったと考えられます。2020 年に Lord らが Current Biology 誌で報告したケサイのゲノム解析でも、絶滅の少し前まで集団は遺伝的に安定していた一方で、温暖化の急変には対応しきれなかった様子が浮かびあがっています。
人類の狩猟が果たした役割
1割程度の狩猟圧が「最後の一押し」に
人類の狩猟については、2007 年にロシア・ユカギル地方で見つかった成体ケサイの椎骨に矢じりが刺さった状態が確認されており、狩猟対象になっていたのは確かです。ただし個体数の直接的な壊滅につながる規模ではなく、各世代の 1 割前後の低い狩猟圧が推定されています。ゲノム解析からは、狩猟圧そのものは中程度でも、温暖化で分断された残余集団が新たな適地に広がる速度を鈍らせる「最後の一押し」として作用した可能性が指摘されています。
マンモスと同時代の消失
ケサイの消失時期は、大陸のマンモス(ケナガマンモス Mammuthus primigenius)の大陸集団の消失時期とおおむね重なります。氷期草原に特化した二大巨獣が、ほぼ同じ時期に同じ気候的な圧力で姿を消したことは、更新世末期のマンモスステップ動物相の再編を象徴する事例として繰り返し語られてきました。
日本と近縁
ケサイの本種そのものは日本列島までは分布を広げなかったと考えられていますが、日本の更新世にはケサイ属の別種にあたる古い時代のサイ類の化石記録がわずかにあり、氷期のユーラシアが東の端まで陸続きで動物相を交換していた時代の名残を伝えます。
東の分布限界とサハリン
北海道への進入は確認されていない
ケサイ本種の東の分布限界は、東シベリアのコリマ川流域やサハリン北部あたりまでとされ、北海道への進入は現在のところ化石記録では確認されていません。同じ氷期に北海道まで到達したマンモスやナウマンゾウが本州で暮らしていた事実と対比すると・ケサイの「北米にもたどりつけず/日本にもたどりつけなかった」孤立性が浮かび上がります。
近縁の氷期サイたち
ケサイ属 Coelodonta 自体はシベリアやチベット高原から先祖にあたる古い種(C. thibetana・C. nihowanensis など)が知られており・寒冷な高地起源の系統がしだいに毛皮を厚くしていった進化の道筋が復元されています。ユーラシアの氷期サイの系統としては・より南のシロサイに似た大型種エラスモテリウム Elasmotherium sibiricum との対比も語られますが・両者は別系統で体格や角の形もかなり異なる存在です。
関連ページ

参考
- Wikipedia (en): Woolly rhinoceros(分類・大きさ・分布・生態・絶滅の総合出典)
- Stuart, A.J. & Lister, A.M. (2012) Extinction chronology of the woolly rhinoceros. Quaternary Science Reviews 51(絶滅年代の一次データ)
- Lord, E. et al. (2020) Pre-extinction Demographic Stability and Genomic Signatures of Adaptation. Current Biology 30(絶滅直前まで集団が安定という2020年ゲノム論文)
- IUCN Red List: Dicerorhinus sumatrensis(最近縁の現生種スマトラサイの評価)
画像出典
- アイキャッチ(雪の中を歩くケサイ・Benjamin Langlois): Benjamin Langlois, CC BY-SA 4.0, via Wikimedia Commons
- 突進するケサイ: Szymon Górnicki, CC BY-SA 4.0, via Wikimedia Commons
- ポーランド・Dzierżno 産の骨格: Silar, CC BY-SA 4.0, via Wikimedia Commons
- ノヴォシビルスクの骨格: JukoFF, CC BY-SA 4.0, via Wikimedia Commons
- シレジアの頭骨: Silar, CC BY-SA 4.0, via Wikimedia Commons
- ショーヴェ洞窟のケサイ壁画: Inocybe, Public domain, via Wikimedia Commons
- Mauricio Antón による科学的復元画: Mauricio Antón, CC BY 2.5, via Wikimedia Commons
- 走るケサイの復元: Benjamin Langlois, CC BY-SA 4.0, via Wikimedia Commons